Purine: basi azotate al centro della vita cellulare
Le purine sono basi azotate coinvolte nei processi fondamentali della cellula. Entrano nella composizione dei nucleotidi e, quindi, del DNA e dell’RNA; compaiono inoltre in molecole che trasferiscono energia o regolano le reazioni cellulari.
Per comprenderle occorre collegare tre livelli: struttura molecolare, sintesi e degradazione. Questa prospettiva consente di superare uno studio basato soltanto sulla memoria.
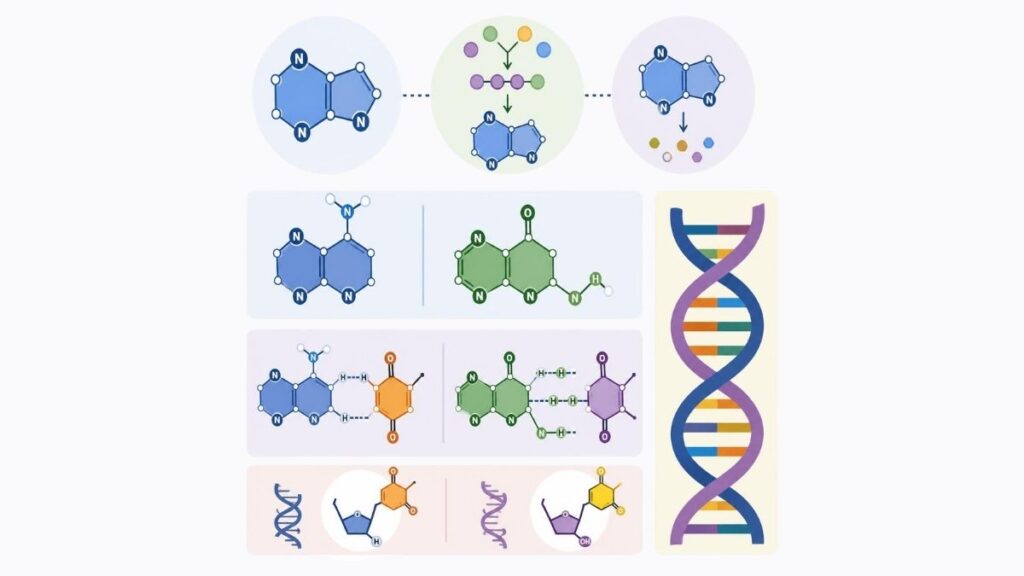
Il nucleo purinico comprende due anelli condensati, uno a sei e uno a cinque atomi, con quattro atomi di azoto complessivi.
Tale architettura accomuna adenina e guanina, pur lasciando loro proprietà chimiche differenti. Nel DNA, l’adenina si appaia con la timina mediante due legami a idrogeno, mentre la guanina si appaia con la citosina attraverso tre legami a idrogeno. Nell’RNA, l’uracile sostituisce la timina.
È essenziale distinguere i termini correlati.
Una base unita a uno zucchero forma un nucleoside, come l’adenosina; aggiungendo uno o più gruppi fosfato si ottiene un nucleotide, come AMP, ADP o ATP. Quest’ultimo è un nucleotide purinico impiegato nel trasferimento di energia. La purina, dunque, non coincide con adenina o guanina, ma rappresenta lo scheletro molecolare comune dal quale derivano anche ipoxantina e xantina.
Nella cellula, queste basi possono essere sintetizzate, recuperate o degradate.
La biosintesi produce prima IMP, da cui derivano AMP e GMP; le vie di recupero riutilizzano basi disponibili, mentre il catabolismo umano conduce all’acido urico. Nei quiz, le alternative errate confondono spesso questi percorsi oppure scambiano basi, nucleosidi e nucleotidi.
Nella sintesi de novo, l’anello viene costruito progressivamente sul PRPP usando atomi provenienti da glutammina, glicina, aspartato, bicarbonato e gruppi formilici trasportati dal tetraidrofolato. L’IMP è il primo nucleotide purinico completo.
Nel salvage pathway, HGPRT recupera ipoxantina e guanina, mentre APRT riutilizza l’adenina. Per risolvere un esercizio bisogna riconoscere che adenina più ribosio forma adenosina, mentre adenosina più fosfato forma AMP, verificando poi se la trasformazione appartiene alla sintesi, al recupero o alla degradazione.
Come riconoscere lo scheletro delle purine
La purina è un composto eterociclico aromatico formato da due anelli fusi.
Un anello pirimidinico a sei membri si unisce a un anello imidazolico a cinque membri. La denominazione strutturale imidazo[4,5-d]pirimidina descrive con precisione questa fusione.
Il termine eterociclo indica infatti un anello che contiene atomi diversi dal carbonio.
Nel nucleo purinico sono presenti quattro atomi di azoto.
L’aromaticità stabilizza il sistema grazie alla distribuzione degli elettroni lungo gli anelli. È proprio il profilo biciclico, con gli atomi di azoto inseriti nella struttura, a permettere di distinguere rapidamente una purina da una pirimidina, che possiede invece un solo anello.
La molecola non sostituita ha formula C₅H₄N₄ e massa molecolare calcolata pari a 120,11 g/mol.
La massa monoisotopica calcolata è invece 120,04360 Da e considera, per ciascun elemento, l’isotopo più abbondante. Sono grandezze diverse: la prima deriva dalla media ponderata delle masse isotopiche, mentre la seconda corrisponde a una specifica composizione isotopica.
La purina può assumere diverse forme tautomeriche, tra cui 1H, 3H, 7H e 9H.
La tautomeria consiste nello spostamento reversibile di un protone accompagnato dalla ridistribuzione dei doppi legami. Nei test di ammissione o del semestre aperto non è necessario disegnare ogni tautòmero, ma occorre riconoscere il doppio anello e non confonderlo con quello delle pirimidine.
Adenina e guanina sono basi puriniche presenti negli acidi nucleici.
Quando una base si lega a uno zucchero forma un nucleoside; con l’aggiunta di uno o più fosfati si ottiene un nucleotide. Le proprietà funzionali dei nucleotidi dipendono quindi dalla combinazione di base, zucchero e gruppi fosfato.
Sintesi de novo delle purine: dal PRPP all’IMP
Nella biosintesi de novo, la cellula costruisce il nucleo purinico direttamente sul PRPP.
La sigla indica il 5-fosfo-α-D-ribosio-1-difosfato, uno zucchero attivato che fornisce l’impalcatura ribosio-fosfato. Questa modalità distingue la sintesi delle purine da quella delle pirimidine, il cui anello viene formato prima del legame con il ribosio.
Gli atomi del doppio anello vengono aggiunti progressivamente al PRPP. Nell’essere umano, la formazione dell’IMP attraversa dieci reazioni catalizzate in sequenza da sei enzimi.
L’IMP, cioè inosina 5′-monofosfato, costituisce il primo nucleotide purinico completo e non il prodotto terminale dell’intero percorso.
Gli atomi dell’anello provengono da glutammina, glicina, aspartato, CO₂ e N¹⁰-formil-tetraidrofolato.
Per ricordarne l’origine, è più efficace collegare ciascun donatore agli atomi forniti anziché imparare una sequenza priva di relazioni:
- Glutammina fornisce due atomi di azoto in passaggi distinti.
- Glicina apporta due carboni e un atomo di azoto.
- Aspartato contribuisce con un ulteriore atomo di azoto.
- Formil-tetraidrofolato e CO₂ completano gli atomi carboniosi.
La reazione complessiva viene talvolta abbreviata come trasformazione del PRPP, con l’apporto della glutammina, in IMP. Questa formulazione riassume però numerosi intermedi e diversi donatori.
Nei quiz delle università mediche bisogna quindi diffidare delle risposte che presentano il processo come una conversione diretta.
Un altro errore frequente consiste nel considerare l’IMP un prodotto finale.
In realtà, rappresenta il punto di diramazione che alimenta due vie distinte, necessarie per produrre AMP e GMP.
Il controllo decisivo consiste nel verificare dove viene costruito l’anello: nelle purine sul PRPP, nelle pirimidine prima dell’unione con il ribosio.
Purine: il punto di diramazione verso AMP e GMP
L’IMP occupa una posizione centrale nel metabolismo delle purine.
Da questo nucleotide si separano le vie che conducono ad AMP e GMP. La produzione di AMP coinvolge l’aspartato e utilizza GTP come fonte energetica; la sintesi di GMP richiede invece glutammina e consuma ATP.
Questo incrocio energetico contribuisce a coordinare la disponibilità dei due nucleotidi.
Il ramo dell’adenina usa quindi energia fornita da un nucleotide guaninico. Viceversa, quello della guanina utilizza adenosina trifosfato.
Un criterio mnemonico efficace consiste nell’associare ciascun prodotto alla fonte energetica opposta: GTP per AMP e ATP per GMP. La relazione deve però essere interpretata come regolazione coordinata, non come trasformazione di GTP in AMP o di ATP in GMP.
AMP significa adenosina 5′-monofosfato, mentre GMP indica guanosina 5′-monofosfato.
Adenosina e guanosina sono nucleosidi perché contengono una base legata al ribosio. L’aggiunta del gruppo fosfato trasforma ciascun nucleoside nel nucleotide corrispondente. Questa distinzione terminologica risolve molte domande costruite su nomi simili.
Adenina più ribosio forma adenosina; aggiungendo un fosfato si ottiene AMP.
Allo stesso modo, guanina più ribosio produce guanosina, dalla quale deriva GMP con l’aggiunta del fosfato. AMP e GMP alimentano successivamente la produzione degli altri nucleotidi cellulari, necessari per sintetizzare RNA, DNA e molecole coinvolte nel trasferimento energetico.
Nei quesiti del semestre filtro conviene individuare prima la categoria richiesta: base, nucleoside oppure nucleotide. Solo dopo si valuta la trasformazione descritta.
Questo ordine riduce gli errori dovuti alle abbreviazioni vicine e permette di collocare correttamente l’IMP come precursore comune, non come sinonimo di AMP o GMP.
Il recupero delle basi già disponibili
La cellula non deve costruire sempre le purine da zero.
Le vie di recupero, chiamate anche salvage pathways, riutilizzano le basi provenienti dal ricambio cellulare. Il processo comprende meno passaggi rispetto alla sintesi de novo, ma richiede ancora il PRPP, che fornisce la componente ribosio-fosfato necessaria alla formazione del nucleotide.
Due enzimi svolgono un ruolo centrale: APRT e HGPRT, indicata anche come HPRT.
Le sigle possono apparire complesse, ma le reazioni seguono uno schema regolare: una base già formata riceve dal PRPP il gruppo fosforibosile e viene convertita nel nucleotide corrispondente.
L’APRT trasferisce il gruppo fosforibosile all’adenina, formando AMP. La HGPRT agisce invece su due basi: converte l’ipoxantina in IMP e la guanina in GMP.
Le reazioni possono essere ricostruite così: adenina più PRPP produce AMP; ipoxantina più PRPP produce IMP; guanina più PRPP produce GMP.
La componente invariabile è il PRPP, mentre cambiano la base, l’enzima e il prodotto. Nei quiz, una trappola comune attribuisce l’adenina alla HGPRT; un’altra scambia i prodotti derivati da ipoxantina e guanina. Per evitarlo, si può associare la lettera A di APRT all’adenina e ricordare che HGPRT gestisce ipoxantina e guanina.
La distinzione concettuale resta decisiva.
La via de novo assembla progressivamente il doppio anello sul PRPP; la via di recupero conserva invece una base purinica già formata e la collega alla componente fosforibosilica. Entrambe producono nucleotidi, ma partono da materiali diversi. Prima di scegliere una risposta, bisogna quindi verificare se l’anello viene costruito oppure semplicemente riutilizzato.
Dalla degradazione delle purine all’acido urico
Il catabolismo trasforma i composti purinici in molecole progressivamente più semplici.
L’adenosina può diventare inosina attraverso la rimozione del gruppo amminico. In seguito, la perdita del ribosio converte l’inosina in ipoxantina. La xantina ossidasi ossida quindi l’ipoxantina a xantina e catalizza anche la successiva trasformazione della xantina in acido urico.
Nell’essere umano, l’acido urico rappresenta il prodotto finale della degradazione delle purine e viene eliminato principalmente attraverso le urine.
Per ricostruire il percorso conviene partire dalla molecola più complessa e seguire l’ordine: adenosina, inosina, ipoxantina, xantina, acido urico.
Durante la sequenza cambiano anche le categorie chimiche. Adenosina e inosina sono nucleosidi, poiché contengono ribosio. Ipoxantina e xantina sono invece basi prive dello zucchero, mentre l’acido urico è il prodotto terminale del catabolismo.
Riconoscere questa progressione aiuta a non trattare tutti i nomi come molecole equivalenti.
Nei test, una risposta errata può invertire xantina e ipoxantina oppure indicare l’urea come prodotto finale delle purine umane.
L’urea riguarda soprattutto l’eliminazione dell’azoto derivato dagli amminoacidi e non sostituisce l’acido urico in questo percorso. Per controllare una risposta bisogna verificare direzione, substrato, enzima e prodotto.
Quando compare la xantina ossidasi, occorre riconoscere due ossidazioni consecutive: ipoxantina verso xantina e xantina verso acido urico.
Il catabolismo va inoltre collegato al recupero, perché l’ipoxantina può essere degradata oppure riutilizzata dalla HGPRT per formare IMP. Questa alternativa distingue una via distruttiva da una via di riciclo.
Una mappa efficace per fissare tutti i passaggi
Lo studio delle purine diventa più chiaro quando struttura e reazioni vengono collegate.
Il nucleo comprende due eterocicli fusi e quattro atomi di azoto; adenina, guanina, ipoxantina e xantina condividono questa impalcatura. La sintesi de novo costruisce l’anello sul PRPP e, attraverso dieci reazioni, produce IMP, punto di partenza per AMP e GMP.
Le vie di recupero impiegano invece APRT e HGPRT per riciclare basi disponibili, mentre il catabolismo conduce all’acido urico.
Per preparare i quiz del semestre filtro, conviene disegnare tre percorsi distinti — sintesi, recupero e degradazione — aggiungendo accanto a ogni freccia substrato, enzima e prodotto. Colori diversi possono separare basi, nucleosidi e nucleotidi.
Il controllo finale deve essere specifico: una purina possiede due anelli fusi e quattro atomi di azoto; una base più ribosio è un nucleoside, mentre l’aggiunta del fosfato forma un nucleotide.
Occorre inoltre saper collocare l’IMP prima della diramazione verso AMP e GMP e riconoscere le due ossidazioni catalizzate dalla xantina ossidasi: ipoxantina → xantina → acido urico.