Come il DNA viene organizzato e reso accessibile nel nucleo
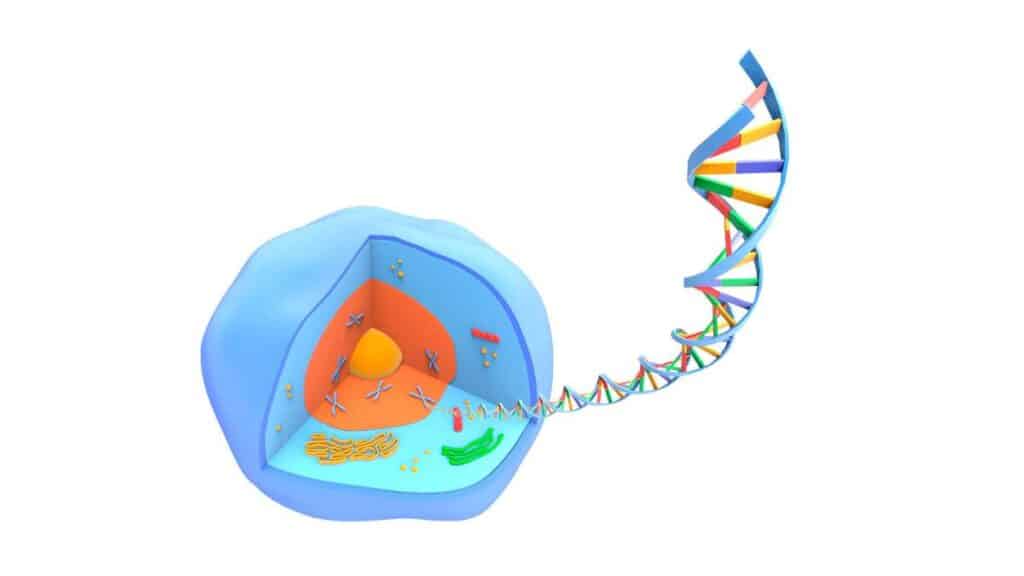
Il DNA contenuto in una cellula umana, se completamente disteso, raggiungerebbe una lunghezza dell’ordine di circa due metri. Eppure deve essere organizzato all’interno di un nucleo di pochi micrometri. Questa organizzazione è resa possibile dalla cromatina, il complesso formato da DNA, istoni e numerose altre proteine associate.
La cromatina non è soltanto un sistema di compattazione. La sua struttura influenza profondamente l’accessibilità del DNA e quindi processi fondamentali come trascrizione, replicazione, riparazione e segregazione dei cromosomi.
Il grado di compattazione varia tra differenti regioni genomiche, tipi cellulari e momenti del ciclo cellulare. Alcune porzioni del genoma risultano più accessibili, mentre altre assumono configurazioni più compatte e meno facilmente raggiungibili dalla macchina trascrizionale.
Per questo la cromatina rappresenta un punto di incontro tra struttura del genoma e regolazione della sua attività.
Che cos’è la cromatina?
La cromatina è l’insieme costituito dal DNA e dalle proteine che ne consentono l’organizzazione all’interno del nucleo delle cellule eucariotiche. Le proteine più importanti dal punto di vista strutturale sono gli istoni, attorno ai quali il DNA si avvolge formando i nucleosomi.
Alla cromatina sono però associate molte altre proteine, tra cui:
- fattori di trascrizione;
- complessi di rimodellamento;
- proteine strutturali;
- enzimi che modificano gli istoni;
- proteine coinvolte nella replicazione e nella riparazione del DNA.
La cromatina deve quindi essere considerata una struttura dinamica, continuamente modificata in relazione alle esigenze della cellula.
Il nucleosoma: l’unità fondamentale della cromatina
Il nucleosoma rappresenta l’unità strutturale di base della cromatina. È formato da circa 147 coppie di basi di DNA avvolte attorno a un ottamero istonico costituito da:
- due molecole di H2A;
- due molecole di H2B;
- due molecole di H3;
- due molecole di H4.
Tra nucleosomi consecutivi è presente un tratto di DNA linker. L’istone H1 può associarsi al DNA in prossimità dei punti di ingresso e uscita dal nucleosoma e contribuire a stabilizzare stati più compatti della cromatina.
La formazione dei nucleosomi riduce notevolmente l’estensione fisica del DNA e crea al tempo stesso un primo livello di controllo sull’accessibilità delle sequenze genomiche.
Come si organizza la cromatina nel nucleo?
La cromatina non segue una semplice sequenza rigida di livelli geometrici.
I nucleosomi interagiscono tra loro e la fibra cromatinica si organizza attraverso piegamenti, domini, loop e interazioni tridimensionali tra regioni del genoma anche molto distanti nella sequenza lineare del DNA.
La visione moderna della cromatina è quindi più complessa dei vecchi modelli basati su una successione obbligatoria di fibre regolari. In particolare, la cosiddetta fibra da 30 nanometri, descritta nei modelli classici, non viene oggi considerata una struttura universale e regolare della cromatina nelle cellule viventi.
L’organizzazione dipende invece da numerosi fattori, tra cui:
- densità dei nucleosomi;
- modificazioni istoniche;
- varianti degli istoni;
- metilazione del DNA;
- complessi strutturali come la cohesina;
- interazioni tra enhancer e promotori;
- posizione delle regioni genomiche all’interno del nucleo.
Questa architettura tridimensionale contribuisce alla regolazione della funzione del genoma.
Eucromatina ed eterocromatina: quali sono le differenze?
Tradizionalmente la cromatina viene distinta in eucromatina ed eterocromatina.
L’eucromatina tende a essere relativamente meno compatta e maggiormente accessibile alle proteine coinvolte nella trascrizione. L’eterocromatina presenta invece una struttura generalmente più compatta ed è spesso associata a una minore attività trascrizionale.
Questa distinzione è utile, ma non deve essere interpretata come una separazione assoluta.
Nel nucleo esiste infatti un continuum di stati cromatinici caratterizzati da differente:
- accessibilità;
- densità nucleosomica;
- composizione proteica;
- pattern di modificazioni epigenetiche;
- attività trascrizionale.
Una stessa regione può inoltre modificare il proprio stato durante lo sviluppo, la differenziazione cellulare o in risposta a segnali biologici.
Eterocromatina costitutiva e facoltativa
Anche l’eterocromatina può essere distinta in differenti categorie.
Eterocromatina costitutiva
L’eterocromatina costitutiva rimane generalmente compatta in molti tipi cellulari ed è frequentemente associata a regioni ricche di sequenze ripetute.
Esempi importanti si trovano nelle regioni pericentromeriche e in altre porzioni del genoma con funzioni prevalentemente strutturali.
Eterocromatina facoltativa
L’eterocromatina facoltativa riguarda invece regioni che possono risultare compatte e silenziate in un determinato tipo cellulare ma attive in un altro.
Un esempio classico è il cromosoma X inattivo.
Cromatina e inattivazione del cromosoma X
Nelle cellule somatiche degli individui con due cromosomi X, uno dei due viene in larga parte inattivato durante lo sviluppo. Questo processo contribuisce alla compensazione del dosaggio dei geni localizzati sul cromosoma X.
L’inattivazione coinvolge diversi livelli di regolazione, tra cui:
- l’RNA non codificante XIST;
- modificazioni degli istoni;
- riorganizzazione tridimensionale della cromatina;
- variazioni dell’accessibilità;
- metilazione del DNA in specifiche regioni.
Il cromosoma inattivo assume una struttura più compatta e può essere osservato come corpo di Barr. Non tutti i geni del cromosoma X inattivo vengono però necessariamente silenziati completamente: alcuni possono sfuggire all’inattivazione.
Cromatina di centromeri e telomeri
Alcune regioni cromosomiche presentano organizzazioni cromatiniche altamente specializzate.
Il centromero contiene una cromatina caratterizzata dalla variante istonica CENP-A, fondamentale per definire l’identità centromerica e permettere l’assemblaggio del cinetocore. Le regioni pericentromeriche presentano invece spesso caratteristiche eterocromatiche importanti per la stabilità cromosomica.
Per approfondire il rapporto tra cromatina centromerica e divisione cellulare puoi consultare gli articoli dedicati al centromero e al cinetocore e alla struttura del cinetocore.
Anche i telomeri, localizzati alle estremità dei cromosomi, possiedono una particolare organizzazione della cromatina che contribuisce a proteggere le estremità cromosomiche e a impedire che vengano riconosciute come rotture del DNA.
Rimodellamento della cromatina
La posizione dei nucleosomi non è fissa. Esistono complessi proteici capaci di utilizzare energia derivata dall’ATP per modificare l’organizzazione locale della cromatina.
Questi complessi di rimodellamento ATP-dipendente possono:
- spostare nucleosomi;
- modificarne la posizione;
- favorirne la rimozione;
- facilitare l’inserimento di varianti istoniche;
- rendere determinate sequenze più o meno accessibili.
Il rimodellamento è quindi essenziale per consentire a proteine regolatrici, RNA polimerasi e sistemi di riparazione di raggiungere il DNA.
Cromatina ed epigenetica
La struttura della cromatina è strettamente collegata all’epigenetica. Tra i principali meccanismi che possono influenzare lo stato della cromatina troviamo:
- modificazioni degli istoni;
- metilazione del DNA;
- varianti istoniche;
- rimodellamento dei nucleosomi;
- RNA non codificanti.
Questi meccanismi possono alterare l’accessibilità del DNA senza modificarne direttamente la sequenza.
Non funzionano però come semplici interruttori “acceso/spento”: il loro significato dipende dalla regione genomica, dal tipo di modifica e dal contesto cellulare.
Cromatina e modificazioni degli istoni
Le modificazioni post-traduzionali degli istoni rappresentano uno dei principali sistemi di regolazione della cromatina.
L’acetilazione di molti residui di lisina è frequentemente associata a stati più accessibili della cromatina. La metilazione degli istoni può invece essere associata sia ad attivazione sia a repressione della trascrizione, in funzione del residuo interessato.
Per esempio:
- H3K4me3 è frequentemente associata a promotori attivi;
- H3K9me3 è associata a molte regioni eterocromatiche;
- H3K27me3 è frequentemente associata alla repressione mediata dai complessi Polycomb.
Questi meccanismi sono approfonditi nell’articolo dedicato agli istoni e alle modificazioni epigenetiche.
Cromatina e trascrizione del DNA
Perché un gene possa essere trascritto, la regione regolatrice e il tratto di DNA interessato devono essere accessibili alle proteine necessarie. La trascrizione del DNA dipende quindi anche dall’organizzazione locale della cromatina.
I nucleosomi possono costituire una barriera fisica al legame di alcuni fattori di trascrizione e alla progressione della RNA polimerasi.
Al contrario, complessi di rimodellamento e modificazioni istoniche possono favorire l’accessibilità di promotori, enhancer e altre regioni regolatrici.
È importante però distinguere accessibilità ed espressione: una regione accessibile non è necessariamente trascritta in modo elevato e la quantità di RNA prodotto dipende anche da molti altri sistemi regolatori.
Cromatina e differenziamento cellulare
Cellule differenti dello stesso organismo contengono in larga parte lo stesso DNA, ma presentano programmi di espressione genica molto diversi. Durante il differenziamento cellulare, la cromatina viene progressivamente riorganizzata.
Alcune regioni diventano più accessibili, mentre altre assumono configurazioni più compatte. I pattern di metilazione del DNA, le modificazioni degli istoni e la posizione dei nucleosomi contribuiscono così a stabilizzare differenti identità cellulari.
Questo spiega perché una cellula muscolare, un neurone o una cellula epatica possano mantenere funzioni completamente differenti pur condividendo quasi lo stesso genoma.
Ambiente e cromatina
Numerosi fattori ambientali e fisiologici possono essere associati a cambiamenti nell’attività cellulare e, in alcuni contesti, anche a modificazioni epigenetiche e cromatiniche. Tra i fattori studiati rientrano alimentazione, esposizione a sostanze chimiche, fumo, condizioni metaboliche e stress fisiologico.
Questo non significa però che ogni esposizione determini automaticamente una modifica epigenetica stabile o ereditabile.
Le associazioni tra ambiente e cromatina devono essere interpretate tenendo conto dell’interazione tra genetica, tipo cellulare, durata dell’esposizione e numerosi altri fattori biologici.
La sindrome di Rett e il rapporto tra genetica e cromatina
Un esempio utile per comprendere il rapporto tra regolazione epigenetica e genetica è rappresentato dalla sindrome di Rett. La malattia è frequentemente associata a mutazioni del gene MECP2.
La proteina MeCP2 è in grado di interagire con DNA metilato e con diversi sistemi di regolazione della cromatina.
La sindrome di Rett mostra quindi come una mutazione nella sequenza di un gene possa compromettere una proteina coinvolta nell’interpretazione dello stato epigenetico e produrre conseguenze profonde sull’espressione genica e sulla funzione neuronale.
Cosa succede alla cromatina durante la replicazione del DNA?
Durante la fase S del ciclo cellulare il DNA deve essere duplicato, ma il materiale genetico non è presente sotto forma di molecola nuda. Quando la forcella replicativa avanza, i nucleosomi devono essere temporaneamente disassemblati o riorganizzati e successivamente ricostituiti sul DNA appena sintetizzato.
Parte degli istoni parentali viene redistribuita sulle molecole figlie, mentre nuovi istoni vengono depositati attraverso specifici chaperoni istonici. Questo processo collega direttamente la struttura della cromatina alla replicazione del DNA.
La ricostituzione dei nucleosomi permette di ristabilire rapidamente l’organizzazione cromatinica e contribuisce al mantenimento di alcuni stati regolatori attraverso le divisioni cellulari.
Cromatina e riparazione del DNA
Quando il DNA viene danneggiato, le proteine responsabili della riparazione devono poter raggiungere la lesione all’interno di un ambiente cromatinico complesso. La struttura della cromatina influenza quindi:
- riconoscimento del danno;
- reclutamento delle proteine di riparazione;
- mobilità delle regioni danneggiate;
- scelta e regolazione delle diverse vie di riparazione.
Nel caso delle rotture a doppio filamento, anche l’organizzazione tridimensionale del genoma svolge un ruolo importante.
Complessi strutturali come la cohesina possono partecipare alla formazione di loop cromatinici e alla gestione delle interazioni tra regioni di DNA durante la risposta al danno.
La scelta tra ricombinazione omologa e giunzione delle estremità non omologhe dipende da molteplici fattori, tra cui fase del ciclo cellulare, disponibilità della cromatide sorella, proteine regolatrici e contesto cromatinico.
Non è quindi corretto descrivere semplicemente l’eterocromatina come una regione nella quale la riparazione avviene sempre più lentamente o con maggiore accumulo di mutazioni.
Cromatina e stabilità del genoma
Una corretta organizzazione della cromatina contribuisce al mantenimento della stabilità genomica.
Alterazioni della struttura cromatinica possono influenzare replicazione, riparazione, segregazione cromosomica e controllo dell’espressione genica. Questo è uno dei motivi per cui modificazioni anomale della cromatina vengono osservate in numerose condizioni patologiche, compresi diversi tumori.
Non esiste però un unico “stato tumorale” della cromatina: differenti tumori possono presentare alterazioni molto diverse nei pattern epigenetici, nell’organizzazione tridimensionale del genoma e nell’attività dei complessi di rimodellamento.
Cromatina ed editing genomico
Anche l’efficienza dei sistemi di editing genomico può dipendere dal contesto cromatinico. Una sequenza fortemente occupata da nucleosomi o inserita in un ambiente poco accessibile può essere raggiunta con efficienza differente rispetto a una regione più esposta.
Nel caso dei sistemi CRISPR-Cas, la cromatina può influenzare sia l’accesso della proteina Cas alla sequenza bersaglio sia i processi di riparazione che intervengono dopo il taglio del DNA.
Non è quindi sufficiente considerare soltanto la sequenza da modificare: anche il contesto strutturale può influenzare l’esito dell’esperimento.
Come si studia la cromatina?
L’organizzazione della cromatina può essere studiata attraverso tecniche di microscopia, biochimica e genomica. Ogni metodo misura un aspetto differente.
Microscopia
La microscopia ottica e a fluorescenza consente di osservare la distribuzione della cromatina nel nucleo, la posizione di specifici cromosomi e la localizzazione di proteine o modificazioni epigenetiche.
ATAC-seq
L’ATAC-seq è una tecnica utilizzata per identificare regioni di cromatina accessibile.
Si basa sull’attività di una transposasi che inserisce adattatori di sequenziamento preferenzialmente nelle regioni del DNA più facilmente raggiungibili. I dati permettono quindi di costruire una mappa dell’accessibilità cromatinica di una popolazione cellulare o, attraverso specifiche varianti, anche di singole cellule.
ChIP-seq
La ChIP-seq permette di individuare regioni genomiche associate a specifiche proteine o modificazioni degli istoni. Può essere utilizzata, per esempio, per studiare la distribuzione di H3K27me3, H3K4me3 oppure il legame di determinati fattori di trascrizione.
Hi-C
La tecnica Hi-C permette di studiare la frequenza dei contatti tra differenti regioni del genoma.
Attraverso questi dati è possibile ricostruire aspetti dell’organizzazione tridimensionale dei cromosomi e osservare come regioni lontane nella sequenza lineare possano trovarsi fisicamente vicine nel nucleo.
RNA-seq e accessibilità della cromatina
L’RNA-seq misura l’abbondanza dei trascritti presenti in un campione, mentre tecniche come ATAC-seq misurano l’accessibilità della cromatina. I due tipi di dati non devono essere confusi.
Analizzati insieme possono però aiutare a comprendere la relazione tra stato cromatinico ed espressione genica.
Cromatina e organizzazione tridimensionale del genoma
Il genoma non è disposto casualmente nel nucleo. I cromosomi occupano territori e la cromatina forma contatti e loop che possono avvicinare regioni lontane nella sequenza lineare.
Queste interazioni possono contribuire alla regolazione dei geni, mettendo in contatto promotori ed enhancer. Complessi come la cohesina partecipano alla formazione dinamica di loop attraverso processi di loop extrusion.
L’organizzazione tridimensionale cambia durante il ciclo cellulare, lo sviluppo e il differenziamento e può risultare alterata in differenti condizioni patologiche.
Cromatina e tumori
Le cellule tumorali possono presentare modificazioni profonde dell’organizzazione cromatinica. Le alterazioni possono riguardare:
- metilazione del DNA;
- modificazioni degli istoni;
- complessi di rimodellamento;
- accessibilità cromatinica;
- organizzazione tridimensionale del genoma.
Cambiamenti nei contatti tra enhancer e promotori possono contribuire alla deregolazione dell’espressione di geni coinvolti nella proliferazione cellulare. Alcuni pattern epigenetici vengono inoltre studiati come biomarcatori per la classificazione o caratterizzazione molecolare di determinati tumori.
Questo non significa però che ogni alterazione dell’architettura cromatinica indichi automaticamente la presenza di una mutazione oncogenica.
Cosa ricordare sulla cromatina per lo studio di Medicina
- la cromatina è formata da DNA e proteine associate;
- il nucleosoma è la sua unità strutturale fondamentale;
- il core nucleosomico contiene H2A, H2B, H3 e H4;
- H1 è un istone linker;
- eucromatina ed eterocromatina descrivono stati differenti di accessibilità e organizzazione;
- questi stati non costituiscono categorie completamente rigide;
- la cromatina viene modificata da rimodellamento ATP-dipendente, modificazioni istoniche e metilazione del DNA;
- l’accessibilità cromatinica influenza la trascrizione;
- durante la replicazione i nucleosomi devono essere riorganizzati e successivamente ricostituiti;
- la cromatina partecipa alla risposta e alla riparazione del danno al DNA;
- la sua organizzazione tridimensionale comprende domini e loop;
- ATAC-seq studia l’accessibilità, ChIP-seq le interazioni con proteine o marcature e Hi-C i contatti tridimensionali.
Domande frequenti sulla cromatina
Che cos’è la cromatina?
La cromatina è il complesso formato dal DNA e dalle proteine associate, soprattutto istoni, che permette di organizzare il genoma all’interno del nucleo.
Qual è la differenza tra cromatina e cromosoma?
La cromatina è il materiale costituito da DNA e proteine. Il cromosoma rappresenta una specifica unità organizzativa di questo materiale e durante la divisione cellulare raggiunge uno stato di elevata condensazione.
Qual è la differenza tra eucromatina ed eterocromatina?
L’eucromatina è generalmente più accessibile e spesso associata a maggiore attività trascrizionale, mentre l’eterocromatina tende a essere più compatta e meno accessibile. Esistono però numerosi stati intermedi.
Che rapporto c’è tra cromatina e nucleosomi?
I nucleosomi rappresentano l’unità strutturale fondamentale della cromatina e sono costituiti da DNA avvolto attorno a un ottamero di istoni.
La cromatina influenza la trascrizione?
Sì. L’accessibilità del DNA dipende anche dalla posizione dei nucleosomi, dalle modificazioni degli istoni e da altri meccanismi di rimodellamento della cromatina.
La cromatina cambia durante la replicazione?
Sì. I nucleosomi devono essere temporaneamente riorganizzati durante il passaggio della forcella replicativa e successivamente ricostituiti sul DNA neoformato.
La cromatina serve solo a compattare il DNA?
No. Oltre alla compattazione, partecipa alla regolazione dell’espressione genica, alla replicazione, alla riparazione del DNA, alla stabilità genomica e all’organizzazione tridimensionale dei cromosomi.