Cellule APC: la regia della risposta immunitaria
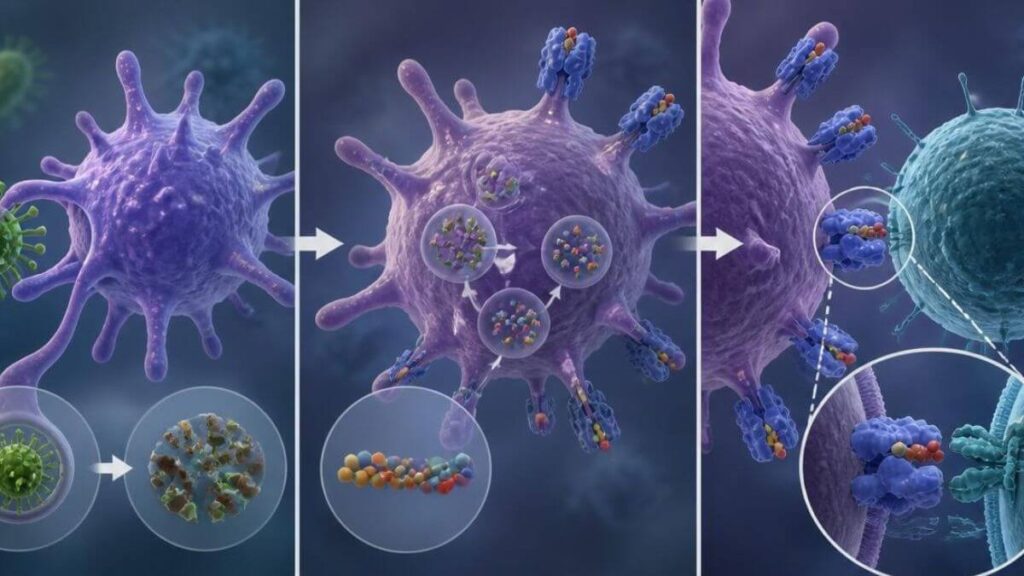
Le cellule APC, dall’inglese Antigen-Presenting Cells, rendono visibili ai linfociti T frammenti proteici potenzialmente pericolosi. In italiano, l’espressione indica le cellule presentanti l’antigene. Queste cellule collegano il riconoscimento iniziale di un agente estraneo all’avvio della risposta immunitaria specifica.
Il loro ruolo è centrale nel sistema immunitario, perché i linfociti T non riconoscono normalmente proteine intere o antigeni liberi. Rilevano invece piccoli peptidi esposti sulla membrana cellulare insieme alle molecole MHC.
Nell’essere umano, queste molecole prendono il nome di HLA e formano con il peptide il complesso riconosciuto dal recettore del linfocita T.
Occorre distinguere due processi spesso confusi durante i test di ingresso universitari e nei quiz del semestre filtro di medicina.
Il processing consiste nella degradazione delle proteine antigeniche in peptidi più piccoli.
La presentazione comprende invece il caricamento del peptide su una molecola MHC e l’esposizione del complesso sulla membrana. Separare questi due momenti permette di ricostruire il percorso senza memorizzare sequenze isolate.
In generale, gli antigeni endogeni seguono la via MHC-I e coinvolgono i linfociti CD8+. Gli antigeni esogeni percorrono soprattutto la via MHC-II e coinvolgono i linfociti CD4+. La cross-presentazione costituisce però un’importante eccezione a questo schema. Per affrontare correttamente i quesiti, bisogna quindi collegare origine dell’antigene, compartimento cellulare, classe MHC e linfocita coinvolto.
Le cellule APC nella presentazione immunitaria
Le principali cellule APC capaci di attivare i linfociti T sono le cellule dendritiche, i macrofagi e i linfociti B. Tutte presentano peptidi antigenici, ma intervengono in contesti differenti e con diversa efficacia.
Le cellule dendritiche svolgono un ruolo particolarmente importante nell’attivazione iniziale dei linfociti T naïve.
Le cellule dendritiche immature risiedono anche nella cute, nell’intestino e nelle vie respiratorie, dove incontrano microrganismi, prodotti microbici e altre sostanze estranee.
Dopo avere catturato l’antigene, possono migrare attraverso la linfa verso i linfonodi locali o raggiungere tessuti linfoidi associati all’intestino. Durante questo percorso maturano e aumentano la capacità di attivare i linfociti T.
La semplice esposizione del complesso peptide-MHC non esaurisce la funzione delle cellule APC. Per un’attivazione efficace, queste cellule presentano anche molecole costimolatorie e molecole di adesione.
Le prime forniscono segnali aggiuntivi al linfocita T, mentre le seconde stabilizzano il contatto tra le membrane e favoriscono la formazione della sinapsi immunologica.
Nei quiz per accedere alle università mediche, una trappola frequente attribuisce la presentazione esclusivamente alle cellule dendritiche.
In realtà, anche macrofagi e linfociti B svolgono questa funzione. Un altro errore consiste nel considerare APC qualsiasi cellula dotata di MHC-I. Quasi tutte le cellule nucleate esprimono MHC-I, ma non tutte attivano linfociti T naïve con la stessa efficacia. Per ricordare la triade principale, usa la sequenza D-M-B: dendritiche, macrofagi, B.
Cellule APC e via citosolica di classe I
Nelle cellule APC e nelle altre cellule nucleate, la via MHC-I presenta soprattutto antigeni endogeni, cioè proteine prodotte all’interno della cellula. Un esempio è rappresentato dalle proteine virali sintetizzate nel citosol di una cellula infetta. Il proteasoma le degrada in peptidi più piccoli, adatti alle fasi successive della presentazione.
TAP trasferisce quindi questi frammenti nel reticolo endoplasmatico utilizzando energia fornita dall’ATP.
La sigla indica il transporter associated with antigen processing. Nel reticolo, il peptide viene caricato sulla molecola HLA-I. Al processo partecipano anche tapasina, calreticulina ed ERp57, componenti del complesso che assiste il caricamento del peptide.
La sequenza può essere memorizzata attraverso quattro passaggi ordinati:
- Proteine citosoliche frammentate dal proteasoma in peptidi utili
- Peptidi trasferiti nel reticolo endoplasmatico tramite TAP
- Caricamento su HLA-I con specifiche proteine assistenti
- Esposizione del complesso per il riconoscimento dei CD8+
Il complesso peptide-HLA-I attraversa il reticolo endoplasmatico e l’apparato di Golgi, quindi raggiunge la superficie cellulare. Qui viene riconosciuto dai linfociti T CD8+.
Poiché MHC-I compare su quasi tutte le cellule nucleate, i CD8+ possono individuare le cellule che espongono peptidi anomali o derivati da un’infezione.
Nei quesiti del semestre filtro o dei test universitari, collega subito quattro elementi: endogeno, citosol, MHC-I e CD8+.
Se compare TAP, la risposta corretta riguarda generalmente questa via oppure la cross-presentazione citosolica. Il controllo del compartimento è decisivo: TAP opera nella membrana del reticolo endoplasmatico e non nei compartimenti endosomiali.
Cellule APC e via vescicolare di classe II
Nelle cellule APC, la via MHC-II riguarda soprattutto antigeni esogeni, provenienti dall’esterno della cellula.
Dopo la cattura, il materiale viene racchiuso in vescicole. Fagosomi ed endosomi possono fondersi con i lisosomi, dove specifici enzimi degradano le proteine. I peptidi prodotti restano così confinati in un ambiente vescicolare.
Nel frattempo, le molecole HLA-II vengono assemblate nel reticolo endoplasmatico e si legano alla catena invariante, chiamata anche invariant chain. Questa proteina impedisce il caricamento prematuro dei peptidi presenti nel reticolo.
Inoltre, indirizza il complesso verso i compartimenti endosomiali nei quali avviene la presentazione di classe II.
Durante il percorso, la catena invariante viene progressivamente degradata. Rimane però un frammento denominato CLIP, costituito da 24 amminoacidi, che occupa temporaneamente la tasca destinata al peptide antigenico.
La molecola HLA-DM rimuove CLIP e favorisce il caricamento di un peptide esogeno stabile. Il complesso peptide-HLA-II raggiunge quindi la membrana cellulare.
A questo punto, il complesso viene riconosciuto dai linfociti T CD4+.
Una domanda può scambiare HLA-DM con TAP: HLA-DM opera nei compartimenti della via MHC-II, mentre TAP caratterizza la via MHC-I. Anche l’origine dell’antigene offre un indizio importante, ma deve essere valutata insieme al compartimento e alla classe MHC.
Se una proteina viene fagocitata e resta nel sistema endosoma-lisosoma, pensa alla via vescicolare. Associa quindi esogeno, lisosoma, MHC-II e CD4+. Se il quesito descrive invece un antigene esterno presentato su HLA-I, verifica la presenza di una cross-presentazione.
Confronto tra i percorsi e cross-presentazione
Il confronto diretto tra i percorsi delle cellule APC riduce gli errori nei quesiti di immunologia.
La via MHC-I parte normalmente da proteine citosoliche e conduce al riconoscimento da parte dei CD8+. La via MHC-II prende invece avvio da proteine internalizzate e coinvolge i CD4+. L’origine dell’antigene orienta quindi il ragionamento, ma non basta da sola.
Cambiano anche i compartimenti cellulari.
Nella prima via intervengono citosol, proteasoma e reticolo endoplasmatico. Nella seconda dominano endosomi, fagosomi e lisosomi. Questa regola non deve però essere applicata in modo assoluto: alcune cellule presentanti l’antigene possono deviare antigeni esogeni verso HLA-I mediante la cross-presentazione.
Il meccanismo consente di presentare un antigene esterno ai linfociti T CD8+ naïve.
Sono descritte due modalità principali. Nella via citosolica intervengono la degradazione proteasomiale e il trasporto dipendente da TAP. Nella via vacuolare agisce invece la catepsina S, mentre TAP non è necessario. La distinzione dipende dunque dagli enzimi e dai compartimenti coinvolti.
Nei test di ingresso e nei quiz del semestre aperto, l’espressione “antigene esogeno su MHC-I” indica spesso la cross-presentazione.
Non scegliere automaticamente MHC-II basandoti soltanto sull’origine esterna dell’antigene. Controlla sempre il linfocita indicato, la classe HLA e gli organelli citati nella traccia.
Proteasoma e TAP suggeriscono la modalità citosolica; catepsina S e indipendenza da TAP orientano verso quella vacuolare. Questo confronto trasforma una lunga sequenza biochimica in una rete di associazioni verificabili e permette di riconoscere l’eccezione senza perdere di vista il percorso prevalente.
Un metodo operativo per risolvere i test universitari
Per studiare le cellule APC, costruisci una tabella con quattro colonne: origine, degradazione, MHC e linfocita.
Inserisci “endogeno, proteasoma, MHC-I, CD8+” nella prima riga e “esogeno, lisosoma, MHC-II, CD4+” nella seconda. Aggiungi una terza riga per la cross-presentazione, specificando che collega un antigene esogeno a MHC-I.
Questo schema permette di recuperare rapidamente le informazioni durante una simulazione e rende immediatamente visibili le eccezioni.
Nell’Immunologia, le domande modificano spesso un solo elemento della sequenza corretta. Perciò, è essenziale leggere ogni opzione fino alla fine e verificare che origine, compartimento, MHC e linfocita siano coerenti tra loro.
Considera questo esempio: “Quale proteina rimuove CLIP dalla molecola HLA-II?”. Escludi il proteasoma, perché degrada proteine citosoliche. Escludi TAP, perché trasporta peptidi nel reticolo endoplasmatico.
La risposta corretta è HLA-DM, che interviene nel compartimento endosomiale e favorisce la sostituzione di CLIP con il peptide antigenico.
In un secondo quesito, potresti incontrare una proteina virale prodotta nel citosol. Cerca allora MHC-I e CD8+, non MHC-II e CD4+.
Durante il ripasso, annota ogni errore indicandone la causa precisa. Distingui tra lacuna teorica, confusione terminologica e lettura frettolosa: le tre difficoltà richiedono correzioni diverse.
Infine, ricostruisci i percorsi senza consultare gli appunti.
Il recupero attivo consolida le associazioni meglio delle riletture ripetute. Bastano schemi brevi, purché includano TAP, CLIP, HLA-DM e i relativi compartimenti cellulari. Se un passaggio non torna, riparti dall’origine dell’antigene e controlla l’intera sequenza.
Dalla sequenza molecolare alla risposta corretta
Comprendere le cellule APC significa seguire il percorso dell’antigene, anziché memorizzare sigle scollegate. Gli antigeni citosolici passano generalmente attraverso proteasoma, TAP e HLA-I, quindi vengono riconosciuti dai CD8+. Gli antigeni internalizzati attraversano invece endosomi e lisosomi: la catena invariante protegge HLA-II, mentre HLA-DM sostituisce CLIP con il peptide destinato al riconoscimento dei CD4+.
La cross-presentazione completa il quadro, perché consente soprattutto alle cellule dendritiche di esporre antigeni esogeni su HLA-I. Non bisogna però dedurre che ogni antigene fagocitato segua questa via: la presentazione esogena avviene prevalentemente su HLA-II, mentre il passaggio verso HLA-I costituisce un meccanismo specializzato. Proteasoma e TAP indicano la modalità citosolica; catepsina S e indipendenza da TAP orientano verso quella vacuolare.
Prima di scegliere una risposta, verifica sempre quattro elementi: origine dell’antigene, compartimento di degradazione, classe HLA e linfocita T. Devi saper localizzare TAP nella membrana del reticolo endoplasmatico e HLA-DM nei compartimenti endosomiali, distinguendo la regola HLA-I/CD8+ dalla regola HLA-II/CD4+ e riconoscendo nella cross-presentazione l’eccezione “antigene esogeno su HLA-I”.